












谷氧还蛋白 GLRX3 铁硫簇结合与转运功能研究综述(含手套箱在本研究中的核心应用解析)
发布日期:2026-11-10 浏览次数:2
一、研究基本内容
本研究聚焦人源单巯基谷氧还蛋白 GLRX3的生化特性,围绕 GLRX3 与铁硫簇的结合、铁硫簇向 apo-IRP1 的转运规律、GSH 与 GLRX2/GLRX3 在胞质铁硫簇转运通路中的分工三个核心科学问题开展体外生化重组与细胞水平验证,属于 CGFS 型单巯基谷氧还蛋白、铁硫簇胞质转运、细胞铁稳态调控方向的基础生化研究。
谷氧还蛋白 GLRX 属于硫氧还蛋白超家族,人类 4 种 GLRX 分为两类:GLRX1、GLRX2 为双巯基型,经典功能偏向氧化还原调控、抗氧化;GLRX3、GLRX5 为 CGFS 基序单巯基型,是铁硫簇结合、转运的关键载体蛋白,参与铁代谢信号传导。既往共识认为 GLRX 家族主要结合 [2Fe-2S] 簇,GLRX3 二聚体以 2GLRX3-2 [2Fe-2S]-4GSH 形式存在,作为胞质铁感受器,和 IRP1 共同感知胞内铁水平。IRP1 本身是铁稳态核心开关:缺铁时为无辅基 apo-IRP1,结合 mRNA 的 UTR 区上调铁吸收;铁充足时结合 [4Fe-4S],转变为顺乌头酸酶,失去 RNA 结合活性。
本研究提出 3 个待验证假说:①GLRX3 能否将铁硫簇转移给 apo-IRP1、重建顺乌头酸酶活性;②GLRX3 除 [2Fe-2S] 外,是否可结合 [4Fe-4S];③GSH、不同 GLRX 亚型在铁硫簇跨线粒体 - 胞质转运链条中的作用。
研究主要结果概括:
1.厌氧纯化的 GLRX3 可快速(30 min)向 apo-IRP1 递送铁硫簇并激活顺乌头酸酶活性,产物为 [4Fe-4S];存在两种机制猜想:两个 [2Fe-2S] 在转运过程中重组合成 [4Fe-4S],或是 GLRX3 本身可直接结合 [4Fe-4S]。
2.GLRX2 仅携带 [2Fe-2S],转运速度远慢于 GLRX3,2 h 才达到转运效率峰值,二者紫外光谱特征峰存在明显差异,佐证 GLRX3 铁硫簇类型的独特性。
3.GSH 是 GLRX3 组装 [2Fe-2S] 的必要条件;无 GSH 条件下,GLRX3 可结合 [4Fe-4S] 并实现快速转运。
4.细胞层面:GLRX2 线粒体亚型过表达会竞争性截留铁硫簇,降低胞质、线粒体顺乌头酸酶活性;抑制 GSH 合成后,胞质顺乌头酸酶活性下降更显著,证明 GSH 主要参与线粒体向胞质的铁硫簇输送。
5.体外共孵育实验证明 GLRX3 可以竞争 GLRX2 的 [2Fe-2S],抑制 GLRX2 向 IRP1 的簇转移,说明 GLRX3 在胞质铁硫簇分配网络里具备调控、分流功能。
最终结论:GLRX3 是少数可同时结合 [2Fe-2S]、[4Fe-4S] 的人源 GLRX,具备快速转运 [4Fe-4S] 至 IRP1 的能力,协同 IRP1 调控胞质铁稳态;GLRX2、GSH、GLRX3 共同构成线粒体输出铁硫簇、胞质分配铁硫簇的功能模块。
二、当前领域研究进展
1.GLRX 家族与铁硫簇的认知演进
早期研究将 GLRX 定义为依赖 GSH 的氧化还原蛋白;后续酵母、植物、哺乳动物研究逐步发现 CGFS 型单巯基 GLRX(GLRX3/GLRX5)是铁硫簇分子伴侣,优先结合 GSH 配位的 [2Fe-2S] 二聚体复合物,GLRX3-BOLA2 复合体是胞质经典 [2Fe-2S] 转运单元,向 NUBP1 等下游蛋白递送簇,是胞质铁硫蛋白成熟通路的关键节点FEBS Press。 过去主流模型认为 [4Fe-4S] 是由 [2Fe-2S] 在下游靶蛋白上组装生成,GLRX 只负责递送 [2Fe-2S] 前体;而本研究及同类生化证据挑战该传统认知,证明人 GLRX3 本身可以稳定承载 [4Fe-4S] 并直接转运,拓展了单巯基 GLRX 的辅基结合谱。
2.IRP1 铁硫簇来源争议
IRP1 的 [4Fe-4S] 辅基来源一直是铁代谢领域热点:线粒体 ISC 系统生成的 [2Fe-2S] 输出到胞质后,经胞质组装系统(CIA)转化为 [4Fe-4S]。学界长期不清楚胞质中哪一类载体蛋白负责把成熟 [4Fe-4S] 交付给 IRP1。本研究直接证明 GLRX3 是 IRP1 的高效供体,区分了 GLRX2 慢转运、GLRX3 快转运的动力学差异,解释了胞质铁信号快速响应的分子基础。
3.GSH 在铁硫簇通路的双重角色
GSH 不仅是 GLRX 铁硫簇的配体,同时维持蛋白巯基还原态、维持簇稳定性;GSH 耗竭会阻断线粒体向胞质的簇转运,胞质铁硫蛋白(如 c-aco)受影响大于线粒体铁硫蛋白(m-aco),这与本研究 BSO 抑制 GSH 合成的细胞实验结果吻合。GSH 缺失时 GLRX3 的结合偏好转向 [4Fe-4S],提示 GSH 浓度是 GLRX3 簇类型切换的调控开关。
4.待解决的科学缺口
GLRX3 结合 [4Fe-4S] 的晶体结构尚未解析;GLRX3 与 BOLA2 复合体在 [4Fe-4S] 转运中的功能尚不明确;GLRX3 在细胞内何时以 [2Fe-2S] 装载形式、何时以 [4Fe-4S] 装载形式存在;GLRX3 竞争性抢夺 GLRX2 铁硫簇的生理意义,是否参与铁过载、氧化应激下的铁重分配。
三、研究方法体系
本研究采用分子克隆 - 原核厌氧表达纯化 - 体外铁硫簇重组 - 体外簇转移动力学实验 - 光谱表征 - 细胞功能验证的多维度生化研究范式,分为五大模块:
1.分子构建:PCR 扩增人 GLRX3 基因,构建 pQE80L-GLRX3-his6 重组质粒,转化 BL21 (DE3),建立可诱导的重组表达体系,同步构建 GLRX2 重组表达质粒作为对照。
2.蛋白厌氧纯化:IPTG 诱导表达,菌体超声破碎后,全程无氧条件下 Ni-NTA 亲和层析纯化带 His 标签的 GLRX3、GLRX2;SDS-PAGE 鉴定蛋白纯度;紫外 - 可见光谱扫描,利用铁硫簇特征吸收峰判断蛋白是否携带铁硫簇、初步判断簇类型。
3.体外铁硫簇化学重组实验:以 Na₂S 为硫源、柠檬酸铁铵 FAC 为铁源,在有无 GSH 两组厌氧体系中,向 apo-GLRX3 组装铁硫簇;紫外光谱判定组装产物类型,再与 apo-IRP1 共孵育,检测顺乌头酸酶活性,判断簇转移能力与速率。
4.体外铁硫簇转移竞争实验:厌氧条件下,GLRX2-holo 蛋白和 apo-IRP1 共孵育体系,加入 GLRX3,对比有无 GLRX3 时 IRP1 酶活变化,验证 GLRX3 的竞争调控效应。
5.细胞水平功能验证:HEK293T 细胞过表达 GLRX2a(线粒体亚型);BSO 抑制 GSH 合成、二酰胺氧化巯基;分别检测线粒体、胞质顺乌头酸酶活性,在细胞层面验证 GSH、GLRX2 对铁硫簇分配的影响。
核心检测手段:紫外 - 可见吸收光谱(Fe-S 簇定性)、顺乌头酸酶酶活测定(功能金标准,直接反映 apo-IRP1 是否成功接收 [4Fe-4S])。
四、研究前景
1.铁代谢基础研究方向
GLRX3 作为可切换 [2Fe-2S]/[4Fe-4S] 的双功能载体,完善哺乳动物胞质 CIA 通路模型;后续可开展 EPR、Mössbauer 谱、冷冻电镜,解析 GLRX3-[4Fe-4S] 复合物结构,阐明簇结合、簇重排、簇转移的分子机制;探索 GLRX3 的铁感受器功能和 IRP1 铁信号通路的上下游协同关系。
2.疾病与转化方向
铁硫簇合成缺陷、铁稳态失衡关联弗里德赖希共济失调、多种神经退行性疾病、贫血、肿瘤代谢重编程。GLRX3 表达异常、铁硫簇转运紊乱会改变 IRP1 活性,进而调控细胞铁摄取。GLRX3 有望作为铁代谢紊乱疾病的标志物或潜在干预靶点;肿瘤细胞依赖铁硫簇支持 DNA 复制、呼吸链,GLRX3 的铁硫簇转运功能可以作为肿瘤代谢靶点开发方向。
3.合成生物学方向
GLRX3 可作为可控的铁硫簇递送元件,用于体外重建铁硫蛋白成熟体系、人工金属酶构建;利用 GLRX3 在 GSH 调控下切换簇类型的特性,构建氧化还原、铁离子响应的生物传感器。
4.技术拓展方向
该套厌氧生化、体外重组、簇转移检测体系,可迁移到 GLRX5、BOLA 家族、ISCU 等其他铁硫簇分子伴侣的功能研究,是金属蛋白生化的标准平台。
五、手套箱在本研究中的核心环节解析(重点)
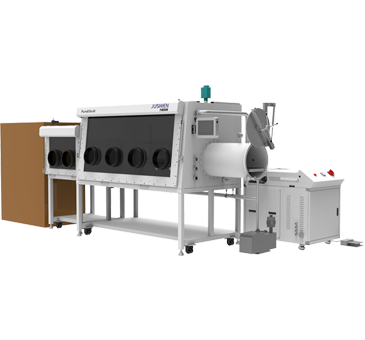
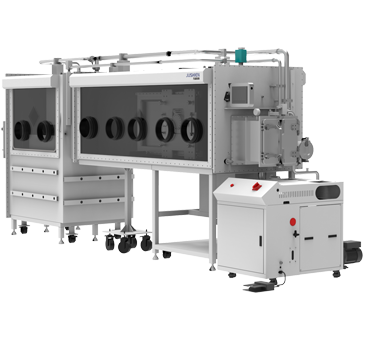
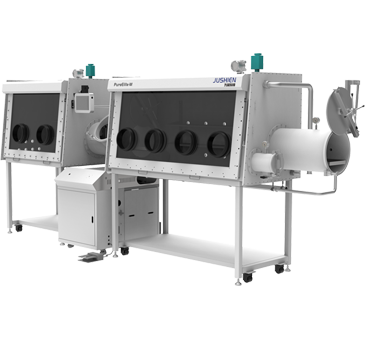
铁硫簇([2Fe-2S]、[4Fe-4S])对氧气极度敏感,O₂会快速氧化破坏簇结构、氧化蛋白半胱氨酸巯基,造成簇丢失、蛋白失活、光谱信号失真、酶活实验完全假阴性;因此所有涉及 holo-GLRX 蛋白纯化、铁硫簇体外组装、簇转移孵育、样品分装的核心步骤,必须在低氧厌氧手套箱(厌氧腔)内完成,是本研究数据可信的前置硬件条件。
常规指标:手套箱内部 O₂<1 ppm,H₂O<1 ppm,高纯氩气 / 氮气循环,配套厌氧缓冲液、厌氧离心管、厌氧层析耗材。
1.GLRX3-his6 目的蛋白纯化环节
菌体破碎之后,上清进入 Ni-NTA 纯化的全部操作转移至手套箱内完成:
- 所有层析缓冲液提前用惰性气体鼓泡除氧,预置换入手套箱;
- 上样、洗杂、洗脱、蛋白浓缩、脱盐全程无氧;
- 纯化得到的 holo-GLRX3 本身自带体内组装的铁硫簇,一旦接触空气,棕褐色的铁硫簇信号快速褪色,紫外特征峰消失,直接失去后续转运实验价值;
- 纯化后分装、密封保存,也在箱内完成,保证拿到的初始蛋白是天然携带铁硫簇的 holo 形式,而不是脱辅基的 apo 蛋白。
2.GLRX3 体外铁硫簇化学重组组装环节(最关键的手套箱依赖步骤)
本研究设置+GSH、-GSH 两组重组体系,用来区分 GLRX3 组装 [2Fe-2S] 和 [4Fe-4S] 的条件:
- 底物 apo-GLRX3、Na₂S、FAC、GSH、缓冲液全部预先除氧,在手套箱内配制反应体系;
- Na₂S(硫化物)遇氧极易氧化生成单质硫,直接导致组装失败,是该实验最容易污染的试剂;
- 体系混匀、控温孵育组装铁硫簇,全部在箱内;组装完成后,在手套箱内取样、封管,再拿出箱外做紫外光谱扫描;
逻辑:如果不在手套箱内组装,氧气会一边氧化新生铁硫簇,一边氧化蛋白活性位点 Cys,无法得到稳定的 [2Fe-2S] 或 [4Fe-4S] 产物,无法观察 GSH 对簇类型的调控效应。
3.GLRX3/GLRX2 向 apo-IRP1 的铁硫簇转移共孵育实验
这是本研究回答核心科学问题的功能实验:
- apo-IRP1 本身是无氧制备的脱辅基蛋白,一旦有氧,巯基氧化,无法接收铁硫簇;
- holo-GLRX(GLRX2/GLRX3)与 apo-IRP1 混合、30 min/2 h 梯度孵育,均在手套箱内进行;
- 孵育结束后,在箱内终止反应、分装样品,再取出测定顺乌头酸酶活性;
- 对比 GLRX3 快速转运、GLRX2 慢速转运、GLRX3 竞争抑制 GLRX2 转运这三组对照,只有全程厌氧,动力学速率差异才是真实的蛋白生化属性,而不是氧气降解带来的假象。
4.对照组样品制备与平行对照管理
- GLRX2 蛋白纯化、GLRX2 铁硫簇转移实验,同样在手套箱内操作,保证 GLRX2 和 GLRX3 的氧环境基线一致;
- 空白对照、只加 apo-IRP1、只加 GLRX 蛋白等阴性对照同步在箱内配制,排除氧波动带来的组间误差。
5.手套箱操作的质控意义,对本研究结论的支撑
本研究一个关键结论:无 GSH 条件下 GLRX3 组装 [4Fe-4S]、快速转运;有 GSH 条件下组装 [2Fe-2S]、转运慢。这个结论的成立高度依赖手套箱稳定低氧环境:
- 若氧浓度波动,会出现部分簇被氧化降解,光谱信号混杂,无法区分是 [2Fe-2S] 还是 [4Fe-4S];
- 氧会差异化破坏两种簇:[4Fe-4S] 对氧气更敏感,更容易分解,一旦有氧,会误判 “GLRX3 无法稳定结合 [4Fe-4S]”,直接推翻本研究核心创新点;
- 酶活结果的定量重复性完全依托手套箱氧含量稳定,保证不同批次、不同条件下的孵育体系氧化压力一致。
6.手套箱配套限制与实验注意点
- 缓冲液、试剂必须提前长时间除氧,不能仅依靠手套箱内部气氛;
- 样品转移过渡舱需要规范换气,避免带入空气;
- 蛋白浓度、反应体积在箱内精准操作,紫外样品管密封后再取出检测;
- 手套箱内部可整合小型紫外检测模块,实现原位光谱采集,进一步减少样品离氧风险,是该方向高水平实验室的升级方案。
该研究属于 CGFS 型单巯基谷氧还蛋白领域具有创新性的生化工作,打破了 GLRX 仅作为 [2Fe-2S] 载体的传统认知,建立了 GLRX3 可结合并转运 [4Fe-4S] 调控 IRP1 铁信号的新模型;整套实验链条高度依赖厌氧手套箱,手套箱不是简单辅助设备,而是决定铁硫簇存在形式、簇类型区分、转运动力学数据真实性的核心硬件,是金属蛋白、铁硫簇生化研究的标配,也是该类实验区别于普通分子生物学实验的标志性特征。
一、研究基本内容
本研究聚焦人源单巯基谷氧还蛋白 GLRX3的生化特性,围绕 GLRX3 与铁硫簇的结合、铁硫簇向 apo-IRP1 的转运规律、GSH 与 GLRX2/GLRX3 在胞质铁硫簇转运通路中的分工三个核心科学问题开展体外生化重组与细胞水平验证,属于 CGFS 型单巯基谷氧还蛋白、铁硫簇胞质转运、细胞铁稳态调控方向的基础生化研究。
谷氧还蛋白 GLRX 属于硫氧还蛋白超家族,人类 4 种 GLRX 分为两类:GLRX1、GLRX2 为双巯基型,经典功能偏向氧化还原调控、抗氧化;GLRX3、GLRX5 为 CGFS 基序单巯基型,是铁硫簇结合、转运的关键载体蛋白,参与铁代谢信号传导。既往共识认为 GLRX 家族主要结合 [2Fe-2S] 簇,GLRX3 二聚体以 2GLRX3-2 [2Fe-2S]-4GSH 形式存在,作为胞质铁感受器,和 IRP1 共同感知胞内铁水平。IRP1 本身是铁稳态核心开关:缺铁时为无辅基 apo-IRP1,结合 mRNA 的 UTR 区上调铁吸收;铁充足时结合 [4Fe-4S],转变为顺乌头酸酶,失去 RNA 结合活性。
本研究提出 3 个待验证假说:①GLRX3 能否将铁硫簇转移给 apo-IRP1、重建顺乌头酸酶活性;②GLRX3 除 [2Fe-2S] 外,是否可结合 [4Fe-4S];③GSH、不同 GLRX 亚型在铁硫簇跨线粒体 - 胞质转运链条中的作用。
研究主要结果概括:
1.厌氧纯化的 GLRX3 可快速(30 min)向 apo-IRP1 递送铁硫簇并激活顺乌头酸酶活性,产物为 [4Fe-4S];存在两种机制猜想:两个 [2Fe-2S] 在转运过程中重组合成 [4Fe-4S],或是 GLRX3 本身可直接结合 [4Fe-4S]。
2.GLRX2 仅携带 [2Fe-2S],转运速度远慢于 GLRX3,2 h 才达到转运效率峰值,二者紫外光谱特征峰存在明显差异,佐证 GLRX3 铁硫簇类型的独特性。
3.GSH 是 GLRX3 组装 [2Fe-2S] 的必要条件;无 GSH 条件下,GLRX3 可结合 [4Fe-4S] 并实现快速转运。
4.细胞层面:GLRX2 线粒体亚型过表达会竞争性截留铁硫簇,降低胞质、线粒体顺乌头酸酶活性;抑制 GSH 合成后,胞质顺乌头酸酶活性下降更显著,证明 GSH 主要参与线粒体向胞质的铁硫簇输送。
5.体外共孵育实验证明 GLRX3 可以竞争 GLRX2 的 [2Fe-2S],抑制 GLRX2 向 IRP1 的簇转移,说明 GLRX3 在胞质铁硫簇分配网络里具备调控、分流功能。
最终结论:GLRX3 是少数可同时结合 [2Fe-2S]、[4Fe-4S] 的人源 GLRX,具备快速转运 [4Fe-4S] 至 IRP1 的能力,协同 IRP1 调控胞质铁稳态;GLRX2、GSH、GLRX3 共同构成线粒体输出铁硫簇、胞质分配铁硫簇的功能模块。
二、当前领域研究进展
1.GLRX 家族与铁硫簇的认知演进
早期研究将 GLRX 定义为依赖 GSH 的氧化还原蛋白;后续酵母、植物、哺乳动物研究逐步发现 CGFS 型单巯基 GLRX(GLRX3/GLRX5)是铁硫簇分子伴侣,优先结合 GSH 配位的 [2Fe-2S] 二聚体复合物,GLRX3-BOLA2 复合体是胞质经典 [2Fe-2S] 转运单元,向 NUBP1 等下游蛋白递送簇,是胞质铁硫蛋白成熟通路的关键节点FEBS Press。 过去主流模型认为 [4Fe-4S] 是由 [2Fe-2S] 在下游靶蛋白上组装生成,GLRX 只负责递送 [2Fe-2S] 前体;而本研究及同类生化证据挑战该传统认知,证明人 GLRX3 本身可以稳定承载 [4Fe-4S] 并直接转运,拓展了单巯基 GLRX 的辅基结合谱。
2.IRP1 铁硫簇来源争议
IRP1 的 [4Fe-4S] 辅基来源一直是铁代谢领域热点:线粒体 ISC 系统生成的 [2Fe-2S] 输出到胞质后,经胞质组装系统(CIA)转化为 [4Fe-4S]。学界长期不清楚胞质中哪一类载体蛋白负责把成熟 [4Fe-4S] 交付给 IRP1。本研究直接证明 GLRX3 是 IRP1 的高效供体,区分了 GLRX2 慢转运、GLRX3 快转运的动力学差异,解释了胞质铁信号快速响应的分子基础。
3.GSH 在铁硫簇通路的双重角色
GSH 不仅是 GLRX 铁硫簇的配体,同时维持蛋白巯基还原态、维持簇稳定性;GSH 耗竭会阻断线粒体向胞质的簇转运,胞质铁硫蛋白(如 c-aco)受影响大于线粒体铁硫蛋白(m-aco),这与本研究 BSO 抑制 GSH 合成的细胞实验结果吻合。GSH 缺失时 GLRX3 的结合偏好转向 [4Fe-4S],提示 GSH 浓度是 GLRX3 簇类型切换的调控开关。
4.待解决的科学缺口
GLRX3 结合 [4Fe-4S] 的晶体结构尚未解析;GLRX3 与 BOLA2 复合体在 [4Fe-4S] 转运中的功能尚不明确;GLRX3 在细胞内何时以 [2Fe-2S] 装载形式、何时以 [4Fe-4S] 装载形式存在;GLRX3 竞争性抢夺 GLRX2 铁硫簇的生理意义,是否参与铁过载、氧化应激下的铁重分配。
三、研究方法体系
本研究采用分子克隆 - 原核厌氧表达纯化 - 体外铁硫簇重组 - 体外簇转移动力学实验 - 光谱表征 - 细胞功能验证的多维度生化研究范式,分为五大模块:
1.分子构建:PCR 扩增人 GLRX3 基因,构建 pQE80L-GLRX3-his6 重组质粒,转化 BL21 (DE3),建立可诱导的重组表达体系,同步构建 GLRX2 重组表达质粒作为对照。
2.蛋白厌氧纯化:IPTG 诱导表达,菌体超声破碎后,全程无氧条件下 Ni-NTA 亲和层析纯化带 His 标签的 GLRX3、GLRX2;SDS-PAGE 鉴定蛋白纯度;紫外 - 可见光谱扫描,利用铁硫簇特征吸收峰判断蛋白是否携带铁硫簇、初步判断簇类型。
3.体外铁硫簇化学重组实验:以 Na₂S 为硫源、柠檬酸铁铵 FAC 为铁源,在有无 GSH 两组厌氧体系中,向 apo-GLRX3 组装铁硫簇;紫外光谱判定组装产物类型,再与 apo-IRP1 共孵育,检测顺乌头酸酶活性,判断簇转移能力与速率。
4.体外铁硫簇转移竞争实验:厌氧条件下,GLRX2-holo 蛋白和 apo-IRP1 共孵育体系,加入 GLRX3,对比有无 GLRX3 时 IRP1 酶活变化,验证 GLRX3 的竞争调控效应。
5.细胞水平功能验证:HEK293T 细胞过表达 GLRX2a(线粒体亚型);BSO 抑制 GSH 合成、二酰胺氧化巯基;分别检测线粒体、胞质顺乌头酸酶活性,在细胞层面验证 GSH、GLRX2 对铁硫簇分配的影响。
核心检测手段:紫外 - 可见吸收光谱(Fe-S 簇定性)、顺乌头酸酶酶活测定(功能金标准,直接反映 apo-IRP1 是否成功接收 [4Fe-4S])。
四、研究前景
1.铁代谢基础研究方向
GLRX3 作为可切换 [2Fe-2S]/[4Fe-4S] 的双功能载体,完善哺乳动物胞质 CIA 通路模型;后续可开展 EPR、Mössbauer 谱、冷冻电镜,解析 GLRX3-[4Fe-4S] 复合物结构,阐明簇结合、簇重排、簇转移的分子机制;探索 GLRX3 的铁感受器功能和 IRP1 铁信号通路的上下游协同关系。
2.疾病与转化方向
铁硫簇合成缺陷、铁稳态失衡关联弗里德赖希共济失调、多种神经退行性疾病、贫血、肿瘤代谢重编程。GLRX3 表达异常、铁硫簇转运紊乱会改变 IRP1 活性,进而调控细胞铁摄取。GLRX3 有望作为铁代谢紊乱疾病的标志物或潜在干预靶点;肿瘤细胞依赖铁硫簇支持 DNA 复制、呼吸链,GLRX3 的铁硫簇转运功能可以作为肿瘤代谢靶点开发方向。
3.合成生物学方向
GLRX3 可作为可控的铁硫簇递送元件,用于体外重建铁硫蛋白成熟体系、人工金属酶构建;利用 GLRX3 在 GSH 调控下切换簇类型的特性,构建氧化还原、铁离子响应的生物传感器。
4.技术拓展方向
该套厌氧生化、体外重组、簇转移检测体系,可迁移到 GLRX5、BOLA 家族、ISCU 等其他铁硫簇分子伴侣的功能研究,是金属蛋白生化的标准平台。
五、手套箱在本研究中的核心环节解析(重点)
铁硫簇([2Fe-2S]、[4Fe-4S])对氧气极度敏感,O₂会快速氧化破坏簇结构、氧化蛋白半胱氨酸巯基,造成簇丢失、蛋白失活、光谱信号失真、酶活实验完全假阴性;因此所有涉及 holo-GLRX 蛋白纯化、铁硫簇体外组装、簇转移孵育、样品分装的核心步骤,必须在低氧厌氧手套箱(厌氧腔)内完成,是本研究数据可信的前置硬件条件。
常规指标:手套箱内部 O₂<1 ppm,H₂O<1 ppm,高纯氩气 / 氮气循环,配套厌氧缓冲液、厌氧离心管、厌氧层析耗材。
1.GLRX3-his6 目的蛋白纯化环节
菌体破碎之后,上清进入 Ni-NTA 纯化的全部操作转移至手套箱内完成:
- 所有层析缓冲液提前用惰性气体鼓泡除氧,预置换入手套箱;
- 上样、洗杂、洗脱、蛋白浓缩、脱盐全程无氧;
- 纯化得到的 holo-GLRX3 本身自带体内组装的铁硫簇,一旦接触空气,棕褐色的铁硫簇信号快速褪色,紫外特征峰消失,直接失去后续转运实验价值;
- 纯化后分装、密封保存,也在箱内完成,保证拿到的初始蛋白是天然携带铁硫簇的 holo 形式,而不是脱辅基的 apo 蛋白。
2.GLRX3 体外铁硫簇化学重组组装环节(最关键的手套箱依赖步骤)
本研究设置+GSH、-GSH 两组重组体系,用来区分 GLRX3 组装 [2Fe-2S] 和 [4Fe-4S] 的条件:
- 底物 apo-GLRX3、Na₂S、FAC、GSH、缓冲液全部预先除氧,在手套箱内配制反应体系;
- Na₂S(硫化物)遇氧极易氧化生成单质硫,直接导致组装失败,是该实验最容易污染的试剂;
- 体系混匀、控温孵育组装铁硫簇,全部在箱内;组装完成后,在手套箱内取样、封管,再拿出箱外做紫外光谱扫描;
逻辑:如果不在手套箱内组装,氧气会一边氧化新生铁硫簇,一边氧化蛋白活性位点 Cys,无法得到稳定的 [2Fe-2S] 或 [4Fe-4S] 产物,无法观察 GSH 对簇类型的调控效应。
3.GLRX3/GLRX2 向 apo-IRP1 的铁硫簇转移共孵育实验
这是本研究回答核心科学问题的功能实验:
- apo-IRP1 本身是无氧制备的脱辅基蛋白,一旦有氧,巯基氧化,无法接收铁硫簇;
- holo-GLRX(GLRX2/GLRX3)与 apo-IRP1 混合、30 min/2 h 梯度孵育,均在手套箱内进行;
- 孵育结束后,在箱内终止反应、分装样品,再取出测定顺乌头酸酶活性;
- 对比 GLRX3 快速转运、GLRX2 慢速转运、GLRX3 竞争抑制 GLRX2 转运这三组对照,只有全程厌氧,动力学速率差异才是真实的蛋白生化属性,而不是氧气降解带来的假象。
4.对照组样品制备与平行对照管理
- GLRX2 蛋白纯化、GLRX2 铁硫簇转移实验,同样在手套箱内操作,保证 GLRX2 和 GLRX3 的氧环境基线一致;
- 空白对照、只加 apo-IRP1、只加 GLRX 蛋白等阴性对照同步在箱内配制,排除氧波动带来的组间误差。
5.手套箱操作的质控意义,对本研究结论的支撑
本研究一个关键结论:无 GSH 条件下 GLRX3 组装 [4Fe-4S]、快速转运;有 GSH 条件下组装 [2Fe-2S]、转运慢。这个结论的成立高度依赖手套箱稳定低氧环境:
- 若氧浓度波动,会出现部分簇被氧化降解,光谱信号混杂,无法区分是 [2Fe-2S] 还是 [4Fe-4S];
- 氧会差异化破坏两种簇:[4Fe-4S] 对氧气更敏感,更容易分解,一旦有氧,会误判 “GLRX3 无法稳定结合 [4Fe-4S]”,直接推翻本研究核心创新点;
- 酶活结果的定量重复性完全依托手套箱氧含量稳定,保证不同批次、不同条件下的孵育体系氧化压力一致。
6.手套箱配套限制与实验注意点
- 缓冲液、试剂必须提前长时间除氧,不能仅依靠手套箱内部气氛;
- 样品转移过渡舱需要规范换气,避免带入空气;
- 蛋白浓度、反应体积在箱内精准操作,紫外样品管密封后再取出检测;
- 手套箱内部可整合小型紫外检测模块,实现原位光谱采集,进一步减少样品离氧风险,是该方向高水平实验室的升级方案。
该研究属于 CGFS 型单巯基谷氧还蛋白领域具有创新性的生化工作,打破了 GLRX 仅作为 [2Fe-2S] 载体的传统认知,建立了 GLRX3 可结合并转运 [4Fe-4S] 调控 IRP1 铁信号的新模型;整套实验链条高度依赖厌氧手套箱,手套箱不是简单辅助设备,而是决定铁硫簇存在形式、簇类型区分、转运动力学数据真实性的核心硬件,是金属蛋白、铁硫簇生化研究的标配,也是该类实验区别于普通分子生物学实验的标志性特征。

