












依托手套箱厌氧生化平台研究志贺氏菌 SUF 与 ISC 系统铁硫簇组装及转运机制
发布日期:2026-11-19 浏览次数:8
一、研究背景
1. 铁硫簇是生命活动中广泛存在的无机辅因子
铁硫簇(Fe-S cluster)是由铁离子与硫离子按不同比例组装而成的无机配位结构,最常见的形式包括 [2Fe-2S]、[3Fe-4S] 和 [4Fe-4S]。它本身并非在细胞内自发形成,而必须由专门的蛋白质机器完成硫的获取、铁的供给、簇的临时搭建、转运与装配到靶蛋白上这一整套过程。在功能上,铁硫簇承担着电子传递、氧化还原催化、底物结合、酶结构稳定以及氧胁迫、铁稳态感知等多种角色,顺乌头酸酶(aconitase)、呼吸链复合物、脱氢酶、转录调控因子 IscR 等一大类蛋白质都依赖铁硫簇才能具备完整活性。
2. 细菌中并存 ISC 与 SUF 两条合成路径
在大肠杆菌等模式细菌中,铁硫簇成熟主要由两套独立系统负责:一套是组成型、日常生理条件下运转的 ISC 系统(iscSUA-hscBA-fdx 基因簇),另一套是在氧化胁迫、缺铁、极端环境等压力条件下接管任务的 SUF 系统(sufABCDSE 操纵子)。二者虽然组分不同,但基本逻辑相似:先由半胱氨酸脱硫酶把硫从 L - 半胱氨酸上解离下来,再交给支架蛋白,在其上临时组装铁硫簇,随后经转运蛋白递送给脱辅基靶蛋白PubMed。已有研究表明,SUF 系统在过氧化氢等氧化环境下相对更具优势,其复合体还可借助 FADH₂ 的还原能力动员铁,以适应低铁、高氧化的胁迫局面。
3. 志贺氏菌的研究空白与课题切入点
志贺氏菌是细菌性痢疾的病原菌,其生活史要经历体外环境、经口入侵、在宿主细胞内繁殖、面对吞噬氧化暴发等多个阶段,氧张力、可利用铁水平和氧化胁迫状态在不同阶段剧烈变化。虽然早期工作已发现福氏志贺氏菌同时携带 Suf 与 Isc 两套预测合成系统,敲除 Suf 或 Isc 相关基因后菌株对氧化应激的存活能力下降,且二者的启动子受 Fur、IscR、OxyR 等调控因子在缺铁、过氧化氢条件下调控,但两套系统在志贺氏菌生活史不同阶段究竟谁主谁辅、各自蛋白质如何分工,此前并不清楚。本课题正是围绕 "阶段分工" 和 "蛋白功能解析" 这两个空白展开。
二、本研究的基本内容
1. 以基因表达差异判断两套系统在生活史中的主次研究
首先从转录层面入手,比较志贺氏菌在侵染 HeLa 细胞前后、以及在氧胁迫条件下,SUF 与 ISC 系统各基因的表达量变化。荧光定量 PCR 的结果显示:在侵染进入宿主细胞之后,以及在长时间氧胁迫条件下,主要被调动、表达上调的是 SUF 系统;ISC 系统则更多对应日常、相对温和的生理状态。由此可以推断,SUF 系统与志贺氏菌成功侵染宿主、适应胞内及极端生存环境密切相关,是其应对压力环境的 "备用主力",而 ISC 承担常态下的铁硫簇成熟任务。
2. 以重组蛋白体外重建拆解各蛋白的功能角色
在基因表达证据之上,研究进一步把 SUF、ISC 系统中的相关蛋白质重组表达并纯化出来,在体外逐条验证其在簇组装、复合体稳定、簇转运、伴侣辅助等环节的作用:
- 支架蛋白功能:SufB 与 IscU 被证实具备支架蛋白质的功能,能够把体系中的无机亚铁离子与硫离子结合起来,在自身表面临时搭建铁硫簇。
- 复合体稳定作用:SufC 与 SufD 可以和 SufB 形成蛋白质复合体,通过多亚基结合提高 SufB 作为支架的稳定性,对应文献中 SufBC₂D 复合体作为新型支架、结合还原型 FADH₂ 参与铁动员的机制背景。
- 转运蛋白功能:SufA 与 IscA 被证实承担铁硫簇转运蛋白的角色,可把支架蛋白上的铁硫簇移交给脱辅基形式的顺乌头酸酶,使原本没有辅因子、缺乏催化活性的酶重新获得催化能力。
- 分子伴侣辅助作用:HscA 与 HscB 作为分子伴侣,能够提高 IscU 转运铁硫簇的能力,帮助支架蛋白完成构象调整与簇的交接。
3. 研究结论的定位
总体而言,本研究在转录层面区分了 SUF 与 ISC 两套系统在志贺氏菌不同生活史阶段的分工,又在体外生化层面逐一界定了支架、复合体、转运、伴侣四类蛋白的具体功能,为理解志贺氏菌致病过程中铁硫簇代谢如何支撑氧化胁迫耐受与胞内存活,以及两类合成系统在细菌中的分子进化关系,提供了理论基础中国生物化学与分子生物学报。
三、当前研究内容与研究进展
1. 基因 — 蛋白 — 靶酶三个层次的证据链
目前这类课题的研究通常形成三层递进:第一层是体内转录与遗传证据,通过 qPCR、启动子融合、基因敲除与回补,判断系统在感染、氧化应激、缺铁等条件下的响应;第二层是重组蛋白的生化解析,通过表达纯化、体外簇重建、复合体共孵育、簇转移与靶酶活性恢复,界定单个蛋白与亚复合体的功能;第三层是光谱与结构表征,借助紫外可见吸收光谱、圆二色谱、电子顺磁共振等手段识别簇的类型([2Fe-2S] 或 [4Fe-4S])及其氧化还原状态。本研究属于前两层为主、并以酶活恢复作为功能判据的典型工作。
2. 与国内外已有认识的衔接
- 在大肠杆菌中,ISC 负责日常组装,SUF 负责胁迫条件下的备份,这一分工框架已较为成熟;SufBCD 复合体的化学计量比、FADH₂ 依赖的铁还原动员、SufSE 向 SufB 供硫等机制也已有较清楚的生化描述。
- 在病原菌中,铁硫簇机器与毒力的联系正在被重新认识:调控因子 IscR 不仅维持簇稳态,还能感知氧张力、氧化 / 亚硝化胁迫和铁可利用度,帮助病原菌在宿主体内的感染进程中协调基因表达;SUF/ISC 的分工直接关系到病原菌在宿主内的存活与侵袭能力。
- 对志贺氏菌本身,早期敲除实验已显示两套系统缺失后均有氧化应激缺陷,isc 突变株还因侵袭力下降而无法在细胞单层形成噬斑;本研究在此基础上把工作推进到蛋白功能与阶段分工层面,属于病原菌铁硫簇成熟方向上较细粒度的解析。
3. 尚未完全解决的问题
现有进展仍留下若干开放问题:一是 SUF 系统在胞内侵染环境中被诱导的上游信号(氧分压、一氧化氮、铁限制、吞噬体酸化等)如何被 OxyR、IscR、Fur 协同解读;二是 SufBC₂D 复合体在志贺氏菌中的精确组装计量、簇结合状态与电子传递路径;三是支架蛋白、转运蛋白与靶酶之间簇转移的中间复合物结构;四是分子伴侣 HscA/HscB 与 ATP 水解偶联的构象循环细节。这些都是后续研究可以深入的方向。
四、主要研究方法
1. 细胞侵染与胁迫处理模型研究
以 HeLa 细胞作为宿主细胞模型,设置侵染前与侵染后两组样本;在体外培养体系中再设置常氧与氧胁迫(如过氧化氢诱导的氧化胁迫、长时间胁迫)条件,采集不同时间点的菌体,用于后续基因表达分析。
2. 荧光定量 PCR(qPCR)
提取不同条件下志贺氏菌的总 RNA,反转录为 cDNA,针对 suf、isc 操纵子内各基因设计引物,以持家基因作内参,比较各基因在侵染前后、胁迫前后的相对表达量,判断哪套系统在特定阶段被优先调动。
3. 重组表达与蛋白纯化
将 SufB、SufC、SufD、SufA、IscU、IscA、HscA、HscB 等编码基因克隆到表达载体,在大肠杆菌宿主中诱导表达,经亲和层析、凝胶过滤等步骤获得纯化蛋白;脱辅基靶酶(脱辅基顺乌头酸酶)则作为簇转移的接受方备用。
4. 体外铁硫簇重建与簇转移实验
在严格厌氧条件下,于支架蛋白体系中加入除氧缓冲液、还原剂(如 DTT)、亚铁盐与硫源(化学重建常用硫化物;酶法重建则由半胱氨酸脱硫酶从 L - 半胱氨酸供硫),孵育使簇在支架蛋白上形成;再加入转运蛋白,最后递交给脱辅基顺乌头酸酶,通过测定酶活恢复程度判断转移是否成功。文献规范要求此类重建全部在严格厌氧环境中完成,氧气含量通常需控制在 2 ppm 以内。
5. 复合体结合与稳定性分析
通过共孵育、凝胶过滤或交联等方式考察 SufB 与 SufC、SufD 是否结合形成复合体,并比较单独 SufB 与复合体在纯化、储存、反应过程中的稳定性与簇组装能力。
6. 光谱与酶活检测
对重建前后的蛋白进行紫外可见吸收光谱扫描,依据特征吸收峰判断簇的形成与类型;以顺乌头酸酶催化柠檬酸 — 异柠檬酸转化的酶活作为簇成功装配到靶蛋白上的功能读数;分子伴侣组则通过比较有 / 无 HscA、HscB 及 ATP 条件下 IscU 的簇转移效率,评价其辅助作用。
五、研究前景
1. 服务病原菌致病机制研究
明确 SUF 系统在侵染与长期胁迫下的主导地位,有助于把铁硫簇代谢与志贺氏菌在胞内寄生、抵抗吞噬氧化暴发、维持核心酶活性等毒力环节联系起来。后续若结合敲除株、动物模型与转录组,可以进一步判断 SUF 组分是否可作为减毒疫苗候选或新型抗菌靶点。
2. 推动细菌分子进化比较
把志贺氏菌的 ISC/SUF 分工与大肠杆菌、幽门螺杆菌、枯草芽孢杆菌及真核线粒体 ISC 机器进行横向比较,可以理解不同生活方式的细菌如何在两套系统之间分配资源,解释 NIF、ISC、SUF 三类机器之间功能可替换性与分化的进化轨迹PubMed。
3. 向酶工程与合成生物学延伸
体外重建一套有功能的 SUF/ISC 组装机器,意味着可以在工程体系中成熟表达对氧敏感的铁硫蛋白,服务于人工光合、固氮酶类似系统、氧化还原酶催化等方向;随着酶法重建效率提高,未来甚至有望在有氧条件下借助完整重组 SUF 体系完成 [4Fe-4S] 蛋白的从头合成PMC。
4. 临床与药物开发层面的潜在价值
铁与硫代谢、氧化胁迫耐受是病原菌与宿主博弈的关键点,解析各蛋白功能后,可针对 SufBC₂D 复合体、脱硫酶 — 支架蛋白界面或伴侣 — 支架互作界面筛选抑制剂,干扰其在宿主内的簇成熟过程,从而削弱其侵染与存活能力。
六、研究中需要手套箱参与的核心环节及运用解析
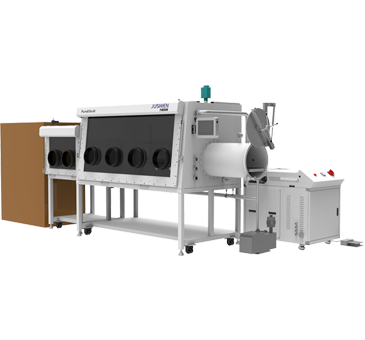
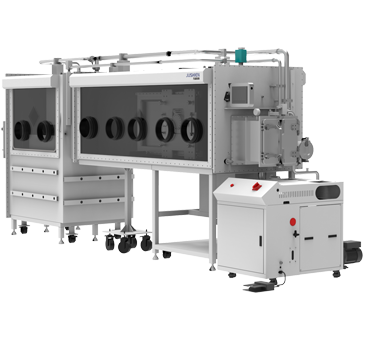
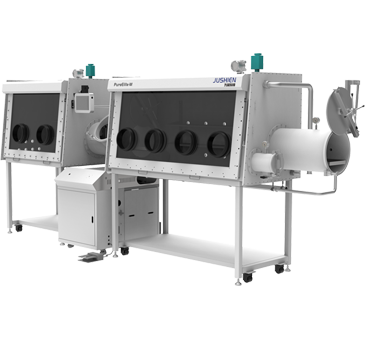
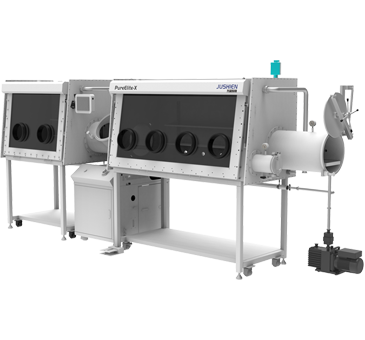
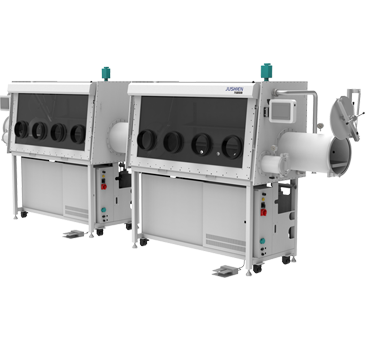
铁硫簇体系最突出的实验难点在于:簇本身对氧气和水分极度敏感,Fe²⁺ 易被氧化为 Fe³⁺,硫化物易被氧化并产生副产物,脱辅基蛋白与半成簇中间态在有氧条件下会迅速失活或发生聚集。因此本研究从蛋白保存到体外重建、再到簇转移与样品表征的多个核心环节,都必须在厌氧 / 惰性气氛、低水低氧的手套箱内完成。下面按实验流程逐段解析手套箱承担的具体角色,这也是九晟手套箱在这类生命科学 — 无机生化交叉课题中的典型应用场景。
1. 纯化后脱辅基蛋白与试剂的厌氧分装、储存
环节定位:重组表达纯化得到的 SufB、IscU、SufA、IscA、HscA、HscB,以及脱辅基顺乌头酸酶,在脱离细胞内还原环境后,表面的半胱氨酸配位位点和预留的簇结合位置容易被氧化;亚铁盐、硫化物母液、DTT 等试剂接触空气后也会变质。
手套箱中的操作:蛋白溶液经除氧缓冲液透析置换后,需转入手套箱内完成分装、冻存或短期保存;铁盐、硫源、缓冲液先经抽真空 — 充惰性气体循环除氧,再带入箱内备用;所有离心管、层析柱部件、厌氧比色皿在使用前进入过渡仓完成抽充置换。
为什么离不开手套箱:若在开放台面分装,样品在等待重建的过程中已经发生氧化,后续测得的组装效率、酶活恢复都会被氧损伤污染,无法区分是蛋白本身功能缺陷还是操作环境导致的失活。九晟手套箱通过箱内惰性气体循环净化,把水、氧维持在很低水平,可保证这批对氧敏感的蛋白与试剂在实验全程处于稳定的还原态环境。
2. 支架蛋白上铁硫簇的体外重建
环节定位:验证 SufB、IscU 的支架功能,需要在体外让 Fe²⁺ 与 S²⁻(或酶法供硫)在蛋白表面组装成 [2Fe-2S]/[4Fe-4S] 簇,这是本研究最核心、对厌氧条件要求最严的一步。
手套箱中的操作:在箱内将除氧缓冲液、还原剂、纯化后的支架蛋白混合平衡,按化学计量加入亚铁离子与硫离子(酶法体系则加入半胱氨酸、脱硫酶及其辅因子),避光厌氧孵育;过程中可在箱内取液监测颜色变化与吸收光谱。规范流程要求全程处于氧气含量低于 2 ppm 的厌氧腔体内PMCpdf.benchchem.com。
手套箱的作用解析:一是隔绝氧气,避免 Fe²⁺ 被氧化、硫化物被氧化失活,保证簇按预期在蛋白配位位点上成簇;二是配合低水氧环境减少金属离子水解、沉淀和非特异性氧化副产物,使重建产物均一;三是把还原剂的有效还原势维持在稳定范围,避免半胱氨酸巯基重新氧化。对 SufBC₂D 这类含黄素辅因子、依赖还原态 FADH₂ 的复合体,低氧环境同样是维持其还原型辅因子状态的前提。
3. SufB–SufC–SufD 复合体的组装与稳定性考察
环节定位:研究需要判断 SufC、SufD 能否与 SufB 形成复合体,并比较复合体相对单体 SufB 的稳定性。多亚基复合体在有氧条件下更易发生界面氧化与解离,含簇中间态尤其脆弱。
手套箱中的操作:在箱内按比例混合三种蛋白,在除氧缓冲液中共孵育形成复合体;如需在箱内完成预层析、取样观察,或与支架重建体系衔接,可避免反复进出空气界面造成的氧化损伤。
手套箱的作用解析:稳定的厌氧环境有助于保持复合体各亚基界面上的配位与疏水相互作用,使凝胶过滤、结合常数等结果反映真实的复合体状态,而不是被氧诱导的解离假象干扰。
4. 铁硫簇从支架蛋白向转运蛋白、再向脱辅基靶酶的转移
环节定位:验证 SufA、IscA 的转运功能,需要把已载簇的支架蛋白与转运蛋白混合,再交给脱辅基顺乌头酸酶,观察靶酶活性恢复;HscA、HscB 辅助 IscU 的实验还需在 ATP 存在下进行伴侣循环。
手套箱中的操作:支架 — 转运 — 靶酶的逐级混合、孵育在箱内完成;反应液分装到密封的厌氧比色皿或样品管后再取出测量,避免在测量等待阶段簇被氧化。酶法重建体系模仿天然细胞过程,由 ISC/SUF 机器直接把簇装配并转移到接受蛋白,效率与专一性更高,对厌氧一致性的要求也更严格。
手套箱的作用解析:簇在支架与转运蛋白之间属于 "临时携带" 状态,配位结合较弱、氧化暴露后极易脱落或降解。手套箱提供的连续惰性气氛,保证转移链条上每一个中间复合物都处于还原、低氧环境,使最终测得的顺乌头酸酶活恢复能够真实归因于转运蛋白与伴侣的功能,而不是环境因素。
5. 光谱表征样品的制备与密封
环节定位:重建与转移结果需要靠紫外可见光谱、圆二色谱,必要时配合电子顺磁共振来判断簇类型、负载量与氧化态。含簇样品一旦接触氧气,特征吸收和信号会随时间漂移。
手套箱中的操作:在箱内把反应液注入带密封塞的石英比色皿或厌氧样品管,密封后再移出箱外上机检测;对需要原位追踪时间过程的实验,直接使用置于箱内或可惰性吹扫的检测接口,减少样品在空气中的暴露时间。已发表的人源 ISCU2 体系工作,即在氩气气氛、氧气低于 1 ppm 的手套箱中完成所有重组反应,并转入厌氧比色皿进行 CD 等测量PMC。
手套箱的作用解析:这一步保证谱图记录的是厌氧状态下真实的簇信号,避免氧化产物造成峰形与簇类型误判,也提高不同批次之间数据的可比性。
6. 对手套箱关键性能的要求(结合本类实验)
低水氧指标:箱内氧气需稳定控制在 ppm 级(典型要求 <1–2 ppm),水分同步保持低位,防止亚铁水解、巯基氧化和簇降解;九晟手套箱以低水氧控制为核心卖点,可满足铁硫簇重建、厌氧生化反应这一类对气氛纯度敏感的实验。
气氛纯度与循环净化:依靠惰性气体(氩气或氮气)循环与净化系统持续去除渗入的氧和水,维持长时间实验过程中环境稳定,适合体外重建、共孵育、取样分析这类耗时操作。
样品传递与操作便利:通过过渡仓完成样品、试剂、耗材的抽真空 — 充惰性气体置换后再进入主箱;前开门式工作位配合长臂手套,便于在箱内进行移液、分装、层析管架设和样品密封等精细操作,减少开门换气带来的气氛波动。
温控与缓冲兼容:部分反应需要在低温或特定温度下孵育,手套箱可与箱内架、冷藏位或外接循环装置配合,维持蛋白复合体与簇中间态的稳定。
手套箱在本研究链条中的定位在本课题中,手套箱并不是可有可无的辅助设备,而是体外功能验证链条上的 "基础设施":它守护从脱辅基蛋白保存、支架成簇、复合体组装、簇逐级转移到光谱制样的整条厌氧反应路径。没有稳定的低水氧环境,铁硫簇无法在体外可靠重建,SufB/IscU 的支架功能、SufA/IscA 的转运功能以及 HscA/HscB 的伴侣辅助作用都难以被干净地观测和定量。从研究装备角度看,这类病原菌铁硫簇成熟、厌氧金属蛋白生化研究,对九晟手套箱所提供的低水氧、惰性气氛、顺畅样品传递与稳定循环净化能力有直接而刚性的需求,也是手套箱在生命科学与无机生化交叉研究中的典型应用场景。
一、研究背景
1. 铁硫簇是生命活动中广泛存在的无机辅因子
铁硫簇(Fe-S cluster)是由铁离子与硫离子按不同比例组装而成的无机配位结构,最常见的形式包括 [2Fe-2S]、[3Fe-4S] 和 [4Fe-4S]。它本身并非在细胞内自发形成,而必须由专门的蛋白质机器完成硫的获取、铁的供给、簇的临时搭建、转运与装配到靶蛋白上这一整套过程。在功能上,铁硫簇承担着电子传递、氧化还原催化、底物结合、酶结构稳定以及氧胁迫、铁稳态感知等多种角色,顺乌头酸酶(aconitase)、呼吸链复合物、脱氢酶、转录调控因子 IscR 等一大类蛋白质都依赖铁硫簇才能具备完整活性。
2. 细菌中并存 ISC 与 SUF 两条合成路径
在大肠杆菌等模式细菌中,铁硫簇成熟主要由两套独立系统负责:一套是组成型、日常生理条件下运转的 ISC 系统(iscSUA-hscBA-fdx 基因簇),另一套是在氧化胁迫、缺铁、极端环境等压力条件下接管任务的 SUF 系统(sufABCDSE 操纵子)。二者虽然组分不同,但基本逻辑相似:先由半胱氨酸脱硫酶把硫从 L - 半胱氨酸上解离下来,再交给支架蛋白,在其上临时组装铁硫簇,随后经转运蛋白递送给脱辅基靶蛋白PubMed。已有研究表明,SUF 系统在过氧化氢等氧化环境下相对更具优势,其复合体还可借助 FADH₂ 的还原能力动员铁,以适应低铁、高氧化的胁迫局面。
3. 志贺氏菌的研究空白与课题切入点
志贺氏菌是细菌性痢疾的病原菌,其生活史要经历体外环境、经口入侵、在宿主细胞内繁殖、面对吞噬氧化暴发等多个阶段,氧张力、可利用铁水平和氧化胁迫状态在不同阶段剧烈变化。虽然早期工作已发现福氏志贺氏菌同时携带 Suf 与 Isc 两套预测合成系统,敲除 Suf 或 Isc 相关基因后菌株对氧化应激的存活能力下降,且二者的启动子受 Fur、IscR、OxyR 等调控因子在缺铁、过氧化氢条件下调控,但两套系统在志贺氏菌生活史不同阶段究竟谁主谁辅、各自蛋白质如何分工,此前并不清楚。本课题正是围绕 "阶段分工" 和 "蛋白功能解析" 这两个空白展开。
二、本研究的基本内容
1. 以基因表达差异判断两套系统在生活史中的主次研究
首先从转录层面入手,比较志贺氏菌在侵染 HeLa 细胞前后、以及在氧胁迫条件下,SUF 与 ISC 系统各基因的表达量变化。荧光定量 PCR 的结果显示:在侵染进入宿主细胞之后,以及在长时间氧胁迫条件下,主要被调动、表达上调的是 SUF 系统;ISC 系统则更多对应日常、相对温和的生理状态。由此可以推断,SUF 系统与志贺氏菌成功侵染宿主、适应胞内及极端生存环境密切相关,是其应对压力环境的 "备用主力",而 ISC 承担常态下的铁硫簇成熟任务。
2. 以重组蛋白体外重建拆解各蛋白的功能角色
在基因表达证据之上,研究进一步把 SUF、ISC 系统中的相关蛋白质重组表达并纯化出来,在体外逐条验证其在簇组装、复合体稳定、簇转运、伴侣辅助等环节的作用:
- 支架蛋白功能:SufB 与 IscU 被证实具备支架蛋白质的功能,能够把体系中的无机亚铁离子与硫离子结合起来,在自身表面临时搭建铁硫簇。
- 复合体稳定作用:SufC 与 SufD 可以和 SufB 形成蛋白质复合体,通过多亚基结合提高 SufB 作为支架的稳定性,对应文献中 SufBC₂D 复合体作为新型支架、结合还原型 FADH₂ 参与铁动员的机制背景。
- 转运蛋白功能:SufA 与 IscA 被证实承担铁硫簇转运蛋白的角色,可把支架蛋白上的铁硫簇移交给脱辅基形式的顺乌头酸酶,使原本没有辅因子、缺乏催化活性的酶重新获得催化能力。
- 分子伴侣辅助作用:HscA 与 HscB 作为分子伴侣,能够提高 IscU 转运铁硫簇的能力,帮助支架蛋白完成构象调整与簇的交接。
3. 研究结论的定位
总体而言,本研究在转录层面区分了 SUF 与 ISC 两套系统在志贺氏菌不同生活史阶段的分工,又在体外生化层面逐一界定了支架、复合体、转运、伴侣四类蛋白的具体功能,为理解志贺氏菌致病过程中铁硫簇代谢如何支撑氧化胁迫耐受与胞内存活,以及两类合成系统在细菌中的分子进化关系,提供了理论基础中国生物化学与分子生物学报。
三、当前研究内容与研究进展
1. 基因 — 蛋白 — 靶酶三个层次的证据链
目前这类课题的研究通常形成三层递进:第一层是体内转录与遗传证据,通过 qPCR、启动子融合、基因敲除与回补,判断系统在感染、氧化应激、缺铁等条件下的响应;第二层是重组蛋白的生化解析,通过表达纯化、体外簇重建、复合体共孵育、簇转移与靶酶活性恢复,界定单个蛋白与亚复合体的功能;第三层是光谱与结构表征,借助紫外可见吸收光谱、圆二色谱、电子顺磁共振等手段识别簇的类型([2Fe-2S] 或 [4Fe-4S])及其氧化还原状态。本研究属于前两层为主、并以酶活恢复作为功能判据的典型工作。
2. 与国内外已有认识的衔接
- 在大肠杆菌中,ISC 负责日常组装,SUF 负责胁迫条件下的备份,这一分工框架已较为成熟;SufBCD 复合体的化学计量比、FADH₂ 依赖的铁还原动员、SufSE 向 SufB 供硫等机制也已有较清楚的生化描述。
- 在病原菌中,铁硫簇机器与毒力的联系正在被重新认识:调控因子 IscR 不仅维持簇稳态,还能感知氧张力、氧化 / 亚硝化胁迫和铁可利用度,帮助病原菌在宿主体内的感染进程中协调基因表达;SUF/ISC 的分工直接关系到病原菌在宿主内的存活与侵袭能力。
- 对志贺氏菌本身,早期敲除实验已显示两套系统缺失后均有氧化应激缺陷,isc 突变株还因侵袭力下降而无法在细胞单层形成噬斑;本研究在此基础上把工作推进到蛋白功能与阶段分工层面,属于病原菌铁硫簇成熟方向上较细粒度的解析。
3. 尚未完全解决的问题
现有进展仍留下若干开放问题:一是 SUF 系统在胞内侵染环境中被诱导的上游信号(氧分压、一氧化氮、铁限制、吞噬体酸化等)如何被 OxyR、IscR、Fur 协同解读;二是 SufBC₂D 复合体在志贺氏菌中的精确组装计量、簇结合状态与电子传递路径;三是支架蛋白、转运蛋白与靶酶之间簇转移的中间复合物结构;四是分子伴侣 HscA/HscB 与 ATP 水解偶联的构象循环细节。这些都是后续研究可以深入的方向。
四、主要研究方法
1. 细胞侵染与胁迫处理模型研究
以 HeLa 细胞作为宿主细胞模型,设置侵染前与侵染后两组样本;在体外培养体系中再设置常氧与氧胁迫(如过氧化氢诱导的氧化胁迫、长时间胁迫)条件,采集不同时间点的菌体,用于后续基因表达分析。
2. 荧光定量 PCR(qPCR)
提取不同条件下志贺氏菌的总 RNA,反转录为 cDNA,针对 suf、isc 操纵子内各基因设计引物,以持家基因作内参,比较各基因在侵染前后、胁迫前后的相对表达量,判断哪套系统在特定阶段被优先调动。
3. 重组表达与蛋白纯化
将 SufB、SufC、SufD、SufA、IscU、IscA、HscA、HscB 等编码基因克隆到表达载体,在大肠杆菌宿主中诱导表达,经亲和层析、凝胶过滤等步骤获得纯化蛋白;脱辅基靶酶(脱辅基顺乌头酸酶)则作为簇转移的接受方备用。
4. 体外铁硫簇重建与簇转移实验
在严格厌氧条件下,于支架蛋白体系中加入除氧缓冲液、还原剂(如 DTT)、亚铁盐与硫源(化学重建常用硫化物;酶法重建则由半胱氨酸脱硫酶从 L - 半胱氨酸供硫),孵育使簇在支架蛋白上形成;再加入转运蛋白,最后递交给脱辅基顺乌头酸酶,通过测定酶活恢复程度判断转移是否成功。文献规范要求此类重建全部在严格厌氧环境中完成,氧气含量通常需控制在 2 ppm 以内。
5. 复合体结合与稳定性分析
通过共孵育、凝胶过滤或交联等方式考察 SufB 与 SufC、SufD 是否结合形成复合体,并比较单独 SufB 与复合体在纯化、储存、反应过程中的稳定性与簇组装能力。
6. 光谱与酶活检测
对重建前后的蛋白进行紫外可见吸收光谱扫描,依据特征吸收峰判断簇的形成与类型;以顺乌头酸酶催化柠檬酸 — 异柠檬酸转化的酶活作为簇成功装配到靶蛋白上的功能读数;分子伴侣组则通过比较有 / 无 HscA、HscB 及 ATP 条件下 IscU 的簇转移效率,评价其辅助作用。
五、研究前景
1. 服务病原菌致病机制研究
明确 SUF 系统在侵染与长期胁迫下的主导地位,有助于把铁硫簇代谢与志贺氏菌在胞内寄生、抵抗吞噬氧化暴发、维持核心酶活性等毒力环节联系起来。后续若结合敲除株、动物模型与转录组,可以进一步判断 SUF 组分是否可作为减毒疫苗候选或新型抗菌靶点。
2. 推动细菌分子进化比较
把志贺氏菌的 ISC/SUF 分工与大肠杆菌、幽门螺杆菌、枯草芽孢杆菌及真核线粒体 ISC 机器进行横向比较,可以理解不同生活方式的细菌如何在两套系统之间分配资源,解释 NIF、ISC、SUF 三类机器之间功能可替换性与分化的进化轨迹PubMed。
3. 向酶工程与合成生物学延伸
体外重建一套有功能的 SUF/ISC 组装机器,意味着可以在工程体系中成熟表达对氧敏感的铁硫蛋白,服务于人工光合、固氮酶类似系统、氧化还原酶催化等方向;随着酶法重建效率提高,未来甚至有望在有氧条件下借助完整重组 SUF 体系完成 [4Fe-4S] 蛋白的从头合成PMC。
4. 临床与药物开发层面的潜在价值
铁与硫代谢、氧化胁迫耐受是病原菌与宿主博弈的关键点,解析各蛋白功能后,可针对 SufBC₂D 复合体、脱硫酶 — 支架蛋白界面或伴侣 — 支架互作界面筛选抑制剂,干扰其在宿主内的簇成熟过程,从而削弱其侵染与存活能力。
六、研究中需要手套箱参与的核心环节及运用解析
铁硫簇体系最突出的实验难点在于:簇本身对氧气和水分极度敏感,Fe²⁺ 易被氧化为 Fe³⁺,硫化物易被氧化并产生副产物,脱辅基蛋白与半成簇中间态在有氧条件下会迅速失活或发生聚集。因此本研究从蛋白保存到体外重建、再到簇转移与样品表征的多个核心环节,都必须在厌氧 / 惰性气氛、低水低氧的手套箱内完成。下面按实验流程逐段解析手套箱承担的具体角色,这也是九晟手套箱在这类生命科学 — 无机生化交叉课题中的典型应用场景。
1. 纯化后脱辅基蛋白与试剂的厌氧分装、储存
环节定位:重组表达纯化得到的 SufB、IscU、SufA、IscA、HscA、HscB,以及脱辅基顺乌头酸酶,在脱离细胞内还原环境后,表面的半胱氨酸配位位点和预留的簇结合位置容易被氧化;亚铁盐、硫化物母液、DTT 等试剂接触空气后也会变质。
手套箱中的操作:蛋白溶液经除氧缓冲液透析置换后,需转入手套箱内完成分装、冻存或短期保存;铁盐、硫源、缓冲液先经抽真空 — 充惰性气体循环除氧,再带入箱内备用;所有离心管、层析柱部件、厌氧比色皿在使用前进入过渡仓完成抽充置换。
为什么离不开手套箱:若在开放台面分装,样品在等待重建的过程中已经发生氧化,后续测得的组装效率、酶活恢复都会被氧损伤污染,无法区分是蛋白本身功能缺陷还是操作环境导致的失活。九晟手套箱通过箱内惰性气体循环净化,把水、氧维持在很低水平,可保证这批对氧敏感的蛋白与试剂在实验全程处于稳定的还原态环境。
2. 支架蛋白上铁硫簇的体外重建
环节定位:验证 SufB、IscU 的支架功能,需要在体外让 Fe²⁺ 与 S²⁻(或酶法供硫)在蛋白表面组装成 [2Fe-2S]/[4Fe-4S] 簇,这是本研究最核心、对厌氧条件要求最严的一步。
手套箱中的操作:在箱内将除氧缓冲液、还原剂、纯化后的支架蛋白混合平衡,按化学计量加入亚铁离子与硫离子(酶法体系则加入半胱氨酸、脱硫酶及其辅因子),避光厌氧孵育;过程中可在箱内取液监测颜色变化与吸收光谱。规范流程要求全程处于氧气含量低于 2 ppm 的厌氧腔体内PMCpdf.benchchem.com。
手套箱的作用解析:一是隔绝氧气,避免 Fe²⁺ 被氧化、硫化物被氧化失活,保证簇按预期在蛋白配位位点上成簇;二是配合低水氧环境减少金属离子水解、沉淀和非特异性氧化副产物,使重建产物均一;三是把还原剂的有效还原势维持在稳定范围,避免半胱氨酸巯基重新氧化。对 SufBC₂D 这类含黄素辅因子、依赖还原态 FADH₂ 的复合体,低氧环境同样是维持其还原型辅因子状态的前提。
3. SufB–SufC–SufD 复合体的组装与稳定性考察
环节定位:研究需要判断 SufC、SufD 能否与 SufB 形成复合体,并比较复合体相对单体 SufB 的稳定性。多亚基复合体在有氧条件下更易发生界面氧化与解离,含簇中间态尤其脆弱。
手套箱中的操作:在箱内按比例混合三种蛋白,在除氧缓冲液中共孵育形成复合体;如需在箱内完成预层析、取样观察,或与支架重建体系衔接,可避免反复进出空气界面造成的氧化损伤。
手套箱的作用解析:稳定的厌氧环境有助于保持复合体各亚基界面上的配位与疏水相互作用,使凝胶过滤、结合常数等结果反映真实的复合体状态,而不是被氧诱导的解离假象干扰。
4. 铁硫簇从支架蛋白向转运蛋白、再向脱辅基靶酶的转移
环节定位:验证 SufA、IscA 的转运功能,需要把已载簇的支架蛋白与转运蛋白混合,再交给脱辅基顺乌头酸酶,观察靶酶活性恢复;HscA、HscB 辅助 IscU 的实验还需在 ATP 存在下进行伴侣循环。
手套箱中的操作:支架 — 转运 — 靶酶的逐级混合、孵育在箱内完成;反应液分装到密封的厌氧比色皿或样品管后再取出测量,避免在测量等待阶段簇被氧化。酶法重建体系模仿天然细胞过程,由 ISC/SUF 机器直接把簇装配并转移到接受蛋白,效率与专一性更高,对厌氧一致性的要求也更严格。
手套箱的作用解析:簇在支架与转运蛋白之间属于 "临时携带" 状态,配位结合较弱、氧化暴露后极易脱落或降解。手套箱提供的连续惰性气氛,保证转移链条上每一个中间复合物都处于还原、低氧环境,使最终测得的顺乌头酸酶活恢复能够真实归因于转运蛋白与伴侣的功能,而不是环境因素。
5. 光谱表征样品的制备与密封
环节定位:重建与转移结果需要靠紫外可见光谱、圆二色谱,必要时配合电子顺磁共振来判断簇类型、负载量与氧化态。含簇样品一旦接触氧气,特征吸收和信号会随时间漂移。
手套箱中的操作:在箱内把反应液注入带密封塞的石英比色皿或厌氧样品管,密封后再移出箱外上机检测;对需要原位追踪时间过程的实验,直接使用置于箱内或可惰性吹扫的检测接口,减少样品在空气中的暴露时间。已发表的人源 ISCU2 体系工作,即在氩气气氛、氧气低于 1 ppm 的手套箱中完成所有重组反应,并转入厌氧比色皿进行 CD 等测量PMC。
手套箱的作用解析:这一步保证谱图记录的是厌氧状态下真实的簇信号,避免氧化产物造成峰形与簇类型误判,也提高不同批次之间数据的可比性。
6. 对手套箱关键性能的要求(结合本类实验)
低水氧指标:箱内氧气需稳定控制在 ppm 级(典型要求 <1–2 ppm),水分同步保持低位,防止亚铁水解、巯基氧化和簇降解;九晟手套箱以低水氧控制为核心卖点,可满足铁硫簇重建、厌氧生化反应这一类对气氛纯度敏感的实验。
气氛纯度与循环净化:依靠惰性气体(氩气或氮气)循环与净化系统持续去除渗入的氧和水,维持长时间实验过程中环境稳定,适合体外重建、共孵育、取样分析这类耗时操作。
样品传递与操作便利:通过过渡仓完成样品、试剂、耗材的抽真空 — 充惰性气体置换后再进入主箱;前开门式工作位配合长臂手套,便于在箱内进行移液、分装、层析管架设和样品密封等精细操作,减少开门换气带来的气氛波动。
温控与缓冲兼容:部分反应需要在低温或特定温度下孵育,手套箱可与箱内架、冷藏位或外接循环装置配合,维持蛋白复合体与簇中间态的稳定。
手套箱在本研究链条中的定位在本课题中,手套箱并不是可有可无的辅助设备,而是体外功能验证链条上的 "基础设施":它守护从脱辅基蛋白保存、支架成簇、复合体组装、簇逐级转移到光谱制样的整条厌氧反应路径。没有稳定的低水氧环境,铁硫簇无法在体外可靠重建,SufB/IscU 的支架功能、SufA/IscA 的转运功能以及 HscA/HscB 的伴侣辅助作用都难以被干净地观测和定量。从研究装备角度看,这类病原菌铁硫簇成熟、厌氧金属蛋白生化研究,对九晟手套箱所提供的低水氧、惰性气氛、顺畅样品传递与稳定循环净化能力有直接而刚性的需求,也是手套箱在生命科学与无机生化交叉研究中的典型应用场景。

